I peptidi nativi possiedono un'alta affinità per il bersaglio e una bassa tossicità, rendendoli strumenti preziosi per i saggi biochimici e la biologia strutturale. Tuttavia, la loro utilità in esperimenti di laboratorio prolungati o in modelli in vivo è frequentemente limitata dalla scarsa stabilità enzimatica, dalla rapida clearance renale e dalla flessibilità strutturale. La modifica dei peptidi affronta direttamente questi limiti intrinseci. Alterando sistematicamente la struttura chimica di una sequenza specifica, i ricercatori possono ottimizzare le proprietà farmacocinetiche, imporre rigidità conformazionale e attaccare sonde funzionali per specifici saggi analitici. Questa guida esamina le modifiche peptidiche standard e avanzate, i loro meccanismi biochimici e le loro applicazioni precise nella ricerca di laboratorio.
Il ruolo delle modifiche nell'ingegneria dei peptidi
Le sequenze lineari non modificate sono altamente suscettibili alla degradazione proteolitica nel siero o negli ambienti intracellulari. Le esopeptidasi scindono gli amminoacidi dai terminali esposti, mentre le endopeptidasi idrolizzano i legami peptidici interni. Inoltre, i brevi peptidi lineari esistono spesso come un insieme di conformazioni in soluzione. Questa mancanza di vincoli strutturali riduce il favore termodinamico del legame con il recettore, poiché si perde una notevole entropia nell'adottare la conformazione attiva. Le modifiche strutturali e terminali sono progettate per risolvere questi problemi, convertendo sequenze transitorie in robuste sonde sperimentali.
Modifiche N-terminali e C-terminali
Le vulnerabilità più immediate su qualsiasi peptide lineare sono la sua ammina N-terminale e l'acido carbossilico C-terminale liberi. Proteggere queste estremità è il primo passo fondamentale per aumentare l'emivita della sequenza.
Acetilazione (N-terminale)
L'acetilazione comporta l'attacco di un gruppo acetile all'ammina N-terminale, rimuovendone la carica positiva e sostituendola con un legame ammidico neutro. Questa modifica imita lo stato naturale di molte proteine intracellulari e blocca completamente l'azione delle amminopeptidasi N-terminali. È un requisito standard per i peptidi destinati ai saggi cellulari in cui l'esposizione al siero è inevitabile.
Ammidazione (C-terminale)
L'ammidazione sostituisce il gruppo idrossilico C-terminale caricato negativamente con un gruppo ammidico neutro. Ciò impedisce il riconoscimento da parte delle carbossipeptidasi. Quando un peptide è sia N-acetilato che C-ammidato, è protetto dalla degradazione terminale. Inoltre, la neutralizzazione di entrambi i terminali rimuove le cariche innaturali dalle estremità della sequenza, consentendo al peptide di ripiegarsi o legarsi senza interferenze elettrostatiche dai propri confini dello scheletro.
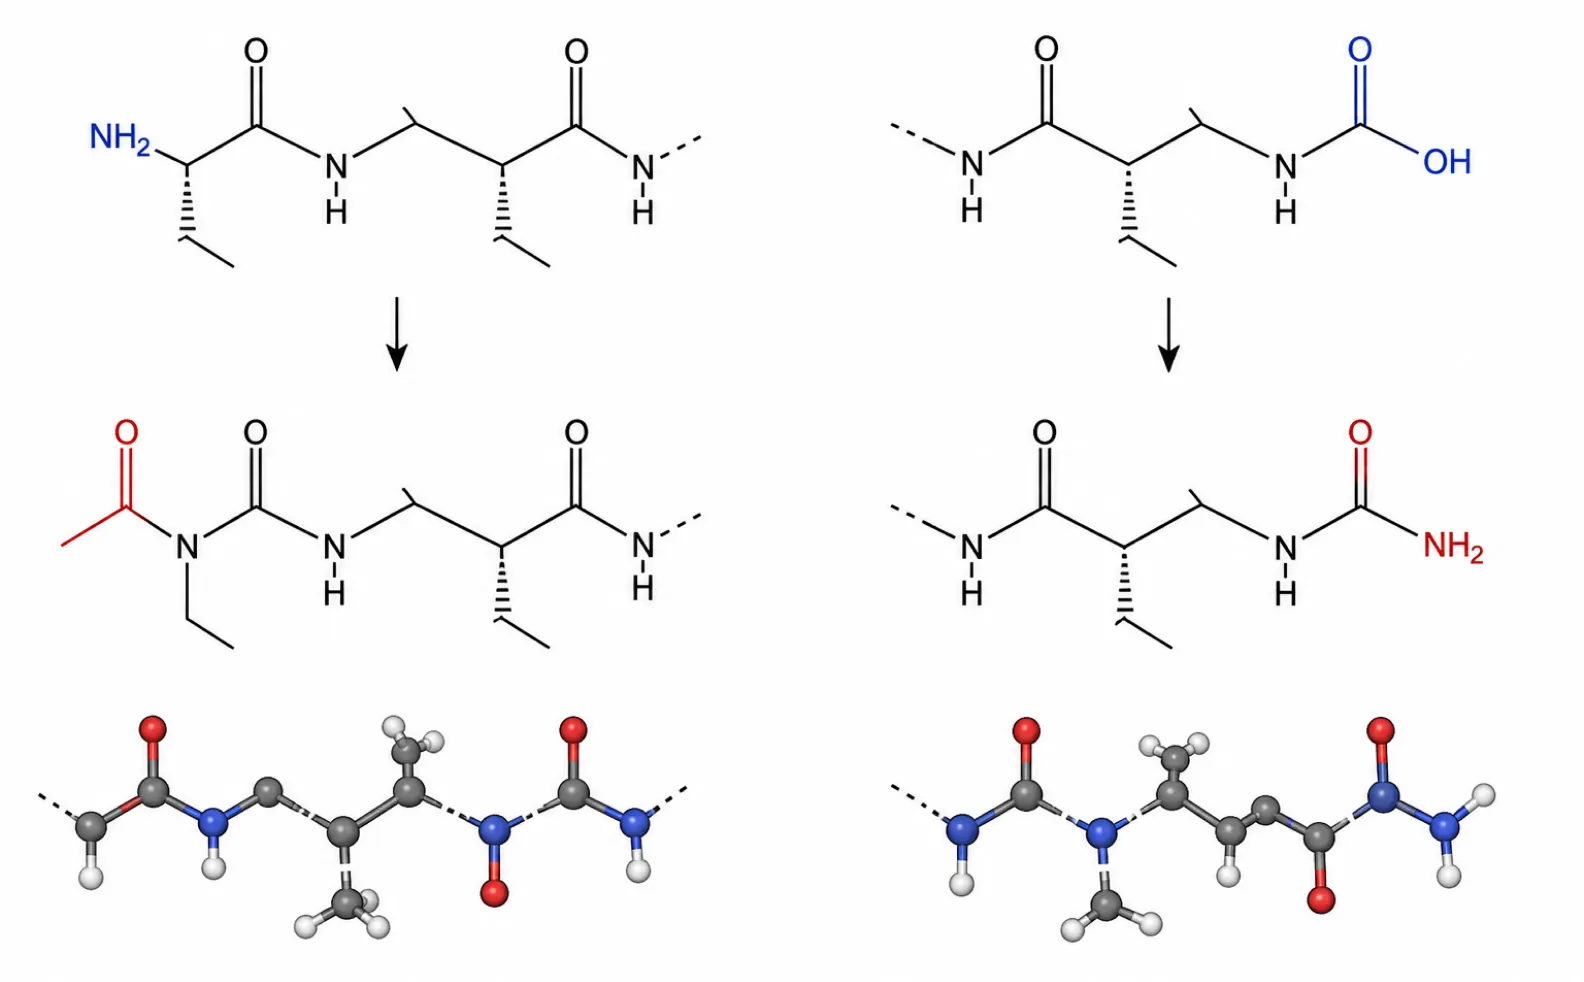
Modifiche strutturali per stabilità e affinità
Per prevenire la scissione enzimatica interna e bloccare un peptide in una specifica forma bioattiva, i ricercatori utilizzano vincoli strutturali. La metodologia più importante è la ciclizzazione.
Ciclizzazione dei peptidi
La ciclizzazione restringe la libertà conformazionale di una sequenza. Questo vincolo fisico protegge i legami interni dalle endopeptidasi e pre-organizza il peptide nella sua conformazione di legame, il che tipicamente aumenta l'affinità recettoriale di diversi ordini di grandezza. Per la sintesi di sequenze specificamente vincolate, i ricercatori si affidano ai ciclopeptidi.
- Ponti disolfuro: La forma più comune di ciclizzazione prevede l'ossidazione dei gruppi tiolici su due residui di cisteina per formare un legame disolfuro covalente. Sebbene semplici da sintetizzare, i legami disolfuro sono suscettibili alla riduzione in ambienti intracellulari altamente riducenti.
- Ponti ammidici (lattami): Formati dalla condensazione delle catene laterali di specifici amminoacidi (tipicamente l'ammina della lisina e l'acido carbossilico dell'acido glutammico o dell'acido aspartico), i ponti lattamici creano una struttura ad anello chimicamente stabile che resiste alla riduzione, offrendo una stabilità superiore per i modelli in vivo.
- Ciclizzazione testa-coda (Head-to-Tail): Questo metodo collega l'N-terminale direttamente al C-terminale, creando un anello continuo. Elimina completamente i bersagli per le esopeptidasi terminali e fornisce la massima rigidità conformazionale.
PEGilazione
La coniugazione con polietilenglicole (PEG) è utilizzata per aumentare il peso molecolare e il raggio idrodinamico di un peptide. Il voluminoso e idratato polimero PEG crea uno scudo sterico attorno allo scheletro del peptide, bloccando fisicamente l'accesso delle proteasi ai siti di clivaggio. Inoltre, l'aumento della massa del coniugato al di sopra della soglia di filtrazione renale (~40-50 kDa) riduce drasticamente i tassi di clearance. La PEGilazione richiede una selezione precisa del sito; attaccare il polimero troppo vicino al dominio di legame attivo si tradurrà in un ingombro sterico e in una perdita di attività biologica.
Modifiche funzionali e analitiche
Oltre alla stabilità, le modifiche sono utilizzate per attaccare tag funzionali per il tracciamento, la purificazione e la mappatura delle interazioni.
Marcatura fluorescente
Per applicazioni in citometria a flusso, microscopia a fluorescenza e cinetica di legame, i fluorofori sono coniugati in modo covalente al peptide. FITC (fluoresceina isotiocianato) e FAM sono scelte standard per l'emissione verde, mentre TAMRA e i coloranti cianinici (Cy3, Cy5) forniscono opzioni dal rosso al vicino infrarosso. Per evitare che il voluminoso fluoroforo idrofobico interferisca con il comportamento di legame nativo del peptide, è pratica standard inserire uno spaziatore alifatico, come l'Ahx (acido amminoesanoico) o una corta catena PEG, tra la sequenza peptidica e il colorante.
Biotinilazione
L'interazione non covalente tra biotina e streptavidina (o avidina) è una delle più forti conosciute in natura, con una costante di dissociazione (Kd) dell'ordine di 10^-14 mol/L. I peptidi biotinilati sono fondamentali per i saggi pull-down, l'immobilizzazione per risonanza plasmonica di superficie (SPR) e i saggi immunoassorbenti legati ad enzimi (ELISA). Similmente ai tag fluorescenti, la biotina viene tipicamente attaccata tramite uno spaziatore Ahx o PEG per garantire che il tag rimanga accessibile al voluminoso tetramero di streptavidina una volta che il peptide è legato al suo bersaglio.
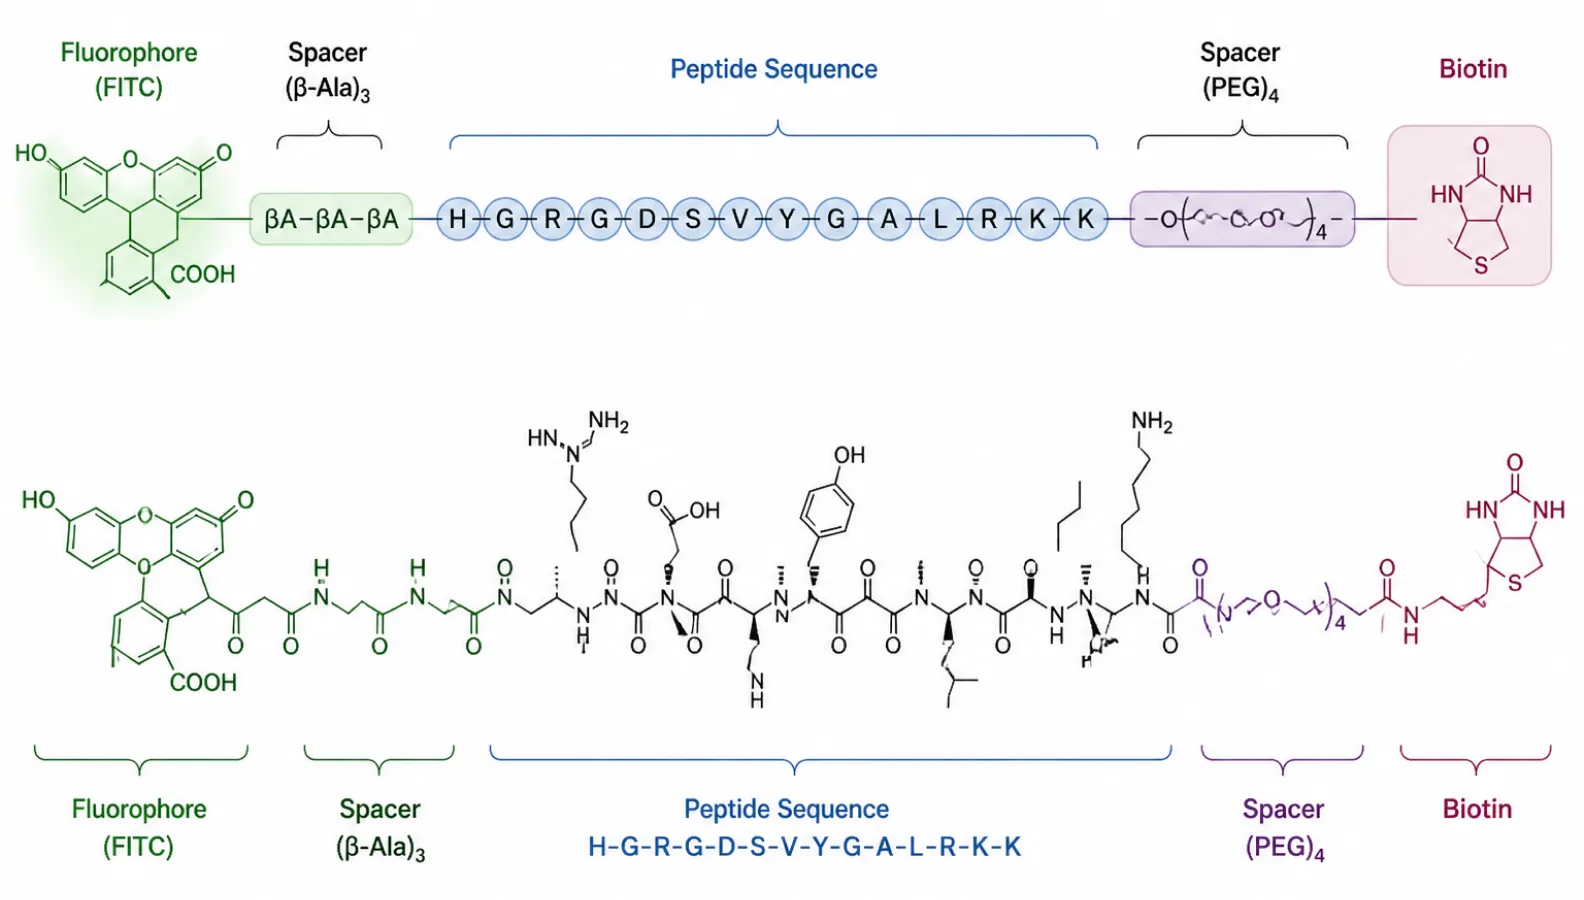
Fosforilazione
Le vie di trasduzione del segnale sono in gran parte regolate dalla fosforilazione reversibile dei residui di serina, treonina e tirosina. La sintesi di peptidi specificamente fosforilati consente ai ricercatori di mappare la specificità delle chinasi, determinare la cinetica delle fosfatasi e isolare le proteine di legame fosfo-dipendenti (come quelle contenenti i domini SH2). L'incorporazione di residui fosforilati richiede elementi costitutivi specializzati durante la sintesi e un'attenta manipolazione per prevenire la defosforilazione durante il clivaggio e la purificazione.
Complessità della sintesi e della produzione
L'introduzione di modifiche complesse durante la sintesi peptidica in fase solida (SPPS) richiede strategie chimiche rigorose, in particolare la protezione ortogonale. Nella SPPS standard, le catene laterali sono protette da gruppi che sono stabili ai cicli iterativi di deprotezione Fmoc ma vengono scissi simultaneamente con il distacco finale del peptide dalla resina.
Quando è richiesta una modifica (come un ponte lattamico o uno specifico fluoroforo sulla catena laterale), i residui bersaglio devono essere protetti da gruppi distinti e "ortogonali" che possono essere rimossi in modo selettivo mentre il resto della sequenza rimane protetto e ancorato alla resina. Ad esempio, la sintesi di un ponte lattamico da catena laterale a catena laterale utilizza spesso gruppi protettivi Allyl e Alloc, che vengono rimossi selettivamente utilizzando un catalizzatore al palladio prima della fase di clivaggio finale. Queste reazioni aggiuntive su resina aumentano la complessità della sintesi, riducono la resa complessiva e richiedono una convalida analitica ad alta risoluzione tramite HPLC e spettrometria di massa per confermare la massa e la purezza corrette assolute. La collaborazione con una struttura specializzata in servizi di modifica dei peptidi garantisce che questi intricati requisiti chimici siano soddisfatti senza compromettere l'integrità del prodotto finale.
Selezione della strategia di modifica ottimale
La scelta della modifica deve allinearsi rigorosamente con l'obiettivo biologico dell'esperimento. Per semplici saggi enzimatici in vitro, l'acetilazione e l'ammidazione terminale possono fornire sufficiente stabilità. Per robusti modelli animali o complessi studi farmacocinetici, la ciclizzazione o la PEGilazione è spesso obbligatoria. Quando si progettano sonde per imaging o saggi pull-down, il posizionamento del fluoroforo o del tag biotina — e l'inclusione di uno spaziatore appropriato — determina la fattibilità funzionale del costrutto. Per sequenze che richiedono più modifiche simultanee o coniugazioni non standard, la nostra piattaforma di sintesi di peptidi su misura fornisce la precisione analitica necessaria per applicazioni di ricerca avanzate.
FAQ
Qual è la differenza funzionale tra l'acetilazione N-terminale e l'ammidazione C-terminale?
L'acetilazione neutralizza la carica positiva dell'N-terminale, mentre l'ammidazione neutralizza la carica negativa del C-terminale. Dal punto di vista funzionale, l'acetilazione blocca le amminopeptidasi N-terminali e l'ammidazione blocca le carbossipeptidasi C-terminali. L'utilizzo di entrambe le modifiche insieme fornisce una protezione completa contro la degradazione enzimatica terminale nei sieri biologici.
Come fa la ciclizzazione a migliorare l'affinità di legame di un peptide?
I peptidi lineari perdono una notevole entropia quando si ripiegano in una conformazione bioattiva al momento del legame con un recettore. La ciclizzazione pre-organizza il peptide in questa conformazione rigida prima che avvenga il legame. Poiché viene spesa meno energia termodinamica per restringere la forma della molecola durante l'evento di legame, l'affinità di legame complessiva risulta in genere aumentata.
Perché è necessario uno spaziatore quando si attacca un tag fluorescente o la biotina?
I fluorofori e la biotina sono molecole voluminose. Se attaccati direttamente alla sequenza peptidica, possono causare ingombro sterico, bloccando fisicamente l'interazione del peptide con il suo recettore bersaglio. Uno spaziatore flessibile, come l'Ahx (acido amminoesanoico) o una catena PEG, fornisce una distanza tra il tag funzionale e il dominio peptidico attivo, preservando l'attività biologica.
La PEGilazione influisce negativamente sull'attività del peptide?
Può farlo, se progettata in modo improprio. Sebbene la PEGilazione aumenti significativamente l'emivita e prevenga la degradazione proteolitica proteggendo il peptide, la grande catena polimerica può anche bloccare il legame con il recettore. È necessaria una PEGilazione sito-specifica, posizionata lontano dall'interfaccia di legame nota, per bilanciare la farmacocinetica migliorata con la funzione biologica preservata.
Perché i gruppi protettivi ortogonali sono necessari per la ciclizzazione dei peptidi?
I gruppi protettivi ortogonali possono essere rimossi in condizioni chimiche specifiche che non intaccano i principali gruppi protettivi sul resto del peptide. Questo permette ai chimici di esporre selettivamente solo le due catene laterali destinate alla ciclizzazione (es. per formare un ponte lattamico) mentre il resto della sequenza rimane protetto, prevenendo reazioni incrociate indesiderate durante la sintesi.
Possono essere applicate più modifiche a un singolo peptide sintetico?
Sì, le modifiche multiple vengono abitualmente combinate. Ad esempio, una singola sequenza può essere N-acetilata, C-ammidata, ciclizzata internamente tramite un legame disolfuro e coniugata con un fluoroforo su uno specifico residuo di lisina. Tuttavia, ogni modifica aggiuntiva aumenta la complessità della sintesi, richiede strategie di protezione ortogonale più sofisticate e generalmente riduce la resa complessiva finale.
-

Synpeptide
Azienda CRO/CDMO specializzata in peptidi
Il team di ricerca di SynPeptide riunisce ricercatori specializzati nella sintesi, purificazione e analisi valutativa dei peptidi. Basandosi sulle competenze maturate sul campo con la sintesi conto terzi e la gamma standard di peptidi, pubblichiamo informazioni basate su evidenze rivolte a ricercatori, responsabili dello sviluppo di formulazioni e sviluppatori di prodotti. Tutti i contenuti pubblicati sono verificati sulla base delle più recenti pubblicazioni scientifiche e dei dati interni di controllo qualità. Poniamo grande attenzione all'accuratezza e alla riproducibilità, incarnando la filosofia di SynPeptide di diffondere informazioni corrette sulla scienza dei peptidi.