
天然多肽具有高靶标亲和力和低毒性,使其成为生化测定和结构生物学的宝贵工具。然而,它们在长时间的实验室实验或体内模型中的实用性常常受到酶稳定性差、肾脏清除快以及结构柔性高的限制。多肽修饰直接解决了这些固有的局限性。通过系统地改变特定序列的化学结构,研究人员可以优化药代动力学特性、增强构象刚性,并为特定的分析测定连接功能性探针。本指南探讨了标准和高级的多肽修饰、其生化机制以及它们在实验室研究中的精确应用。
修饰在多肽工程中的作用
未修饰的线性序列在血清或细胞内环境中极易发生蛋白水解降解。外切肽酶会从暴露的末端切割氨基酸,而内切肽酶则会水解内部的肽键。此外,短线性多肽在溶液中通常以多种构象的集合存在。这种结构约束的缺乏降低了受体结合的热力学有利性,因为在采用活性构象时会丧失大量的熵。结构和末端修饰被设计用来解决这些问题,将瞬态的序列转化为稳健的实验探针。
N端和C端修饰
任何线性多肽上最直接的弱点就是其游离的N端氨基和C端羧酸。保护这些末端是增加序列半衰期的基本第一步。
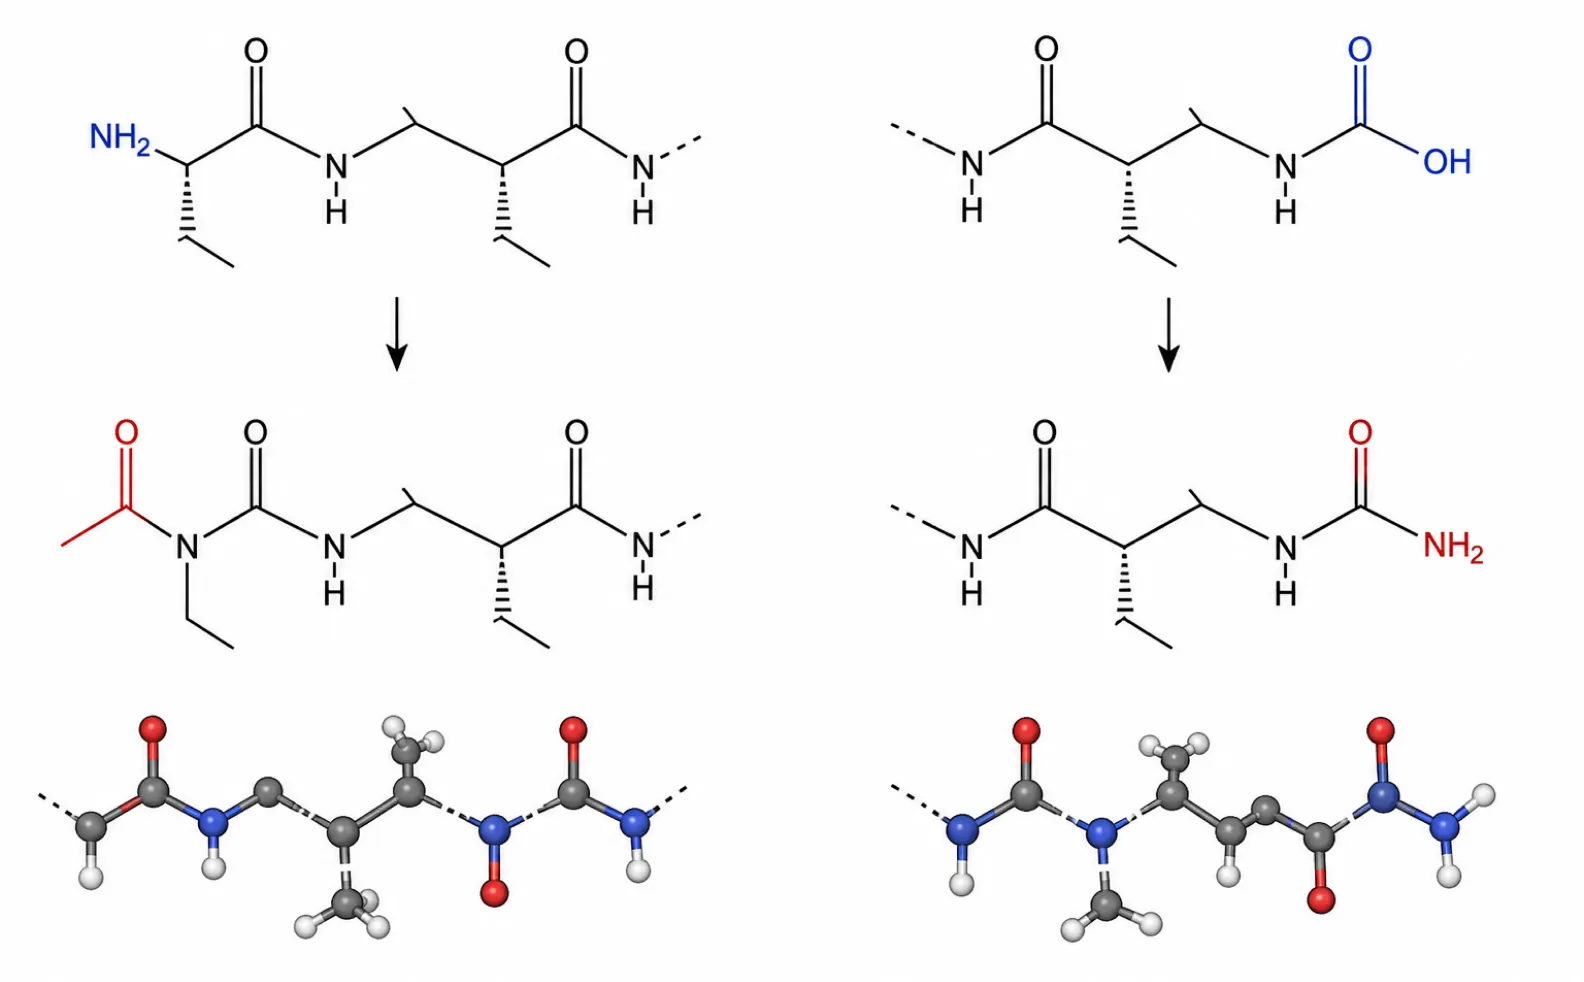
乙酰化 (N端)
乙酰化涉及将乙酰基连接到N端氨基上,消除其正电荷,并以中性的酰胺键取代。这种修饰模拟了许多细胞内蛋白质的自然状态,并完全阻断了N端氨肽酶的作用。对于不可避免会接触血清的细胞测定用多肽来说,这是一项标准要求。
酰胺化 (C端)
酰胺化用中性的酰胺基团取代了带负电荷的C端羟基。这可以防止羧肽酶的识别。当多肽同时被N端乙酰化和C端酰胺化时,它可以免受末端降解。此外,中和两端可以消除序列末端的不自然电荷,使多肽能够折叠或结合,而不受其自身主链边界的静电干扰。
用于稳定性和亲和力的结构修饰
为了防止内部酶切并将多肽锁定在特定的生物活性形状中,研究人员会利用结构约束。最突出的方法是环化。
多肽环化
环化限制了序列的构象自由度。这种物理约束保护内部键免受内切肽酶的破坏,并预先组织多肽使其处于结合构象,这通常能使受体亲和力提高几个数量级。对于特定的受约束序列合成,研究人员依赖于环肽 (cyclopeptides)。
- 二硫键: 最常见的环化形式涉及氧化两个半胱氨酸残基上的硫醇基团以形成共价二硫键。虽然合成简单,但二硫键在高度还原的细胞内环境中容易被还原。
- 酰胺(内酰胺)桥: 通过缩合特定氨基酸的侧链(通常是赖氨酸的氨基与谷氨酸或天冬氨酸的羧酸)形成,内酰胺桥产生一个化学性质稳定的环结构,抗还原能力强,为体内模型提供了卓越的稳定性。
- 首尾环化: 这种方法将N端直接连接到C端,形成一个连续的环。它完全消除了末端外切肽酶的靶点,并提供了最大的构象刚性。
聚乙二醇化 (PEG化)
与聚乙二醇 (PEG) 偶联用于增加多肽的分子量和流体力学半径。庞大、水合的 PEG 聚合物在多肽主链周围形成立体屏蔽,物理上阻挡蛋白酶接触切割位点。此外,将偶联物的质量增加到肾脏过滤阈值(约 40-50 kDa)以上可大幅降低清除率。PEG化需要精确的位点选择;将聚合物连接得太靠近活性结合结构域会导致空间位阻和生物活性的丧失。
功能和分析修饰
除了稳定性,修饰还用于连接功能标签,以进行追踪、纯化和相互作用图谱绘制。
荧光标记
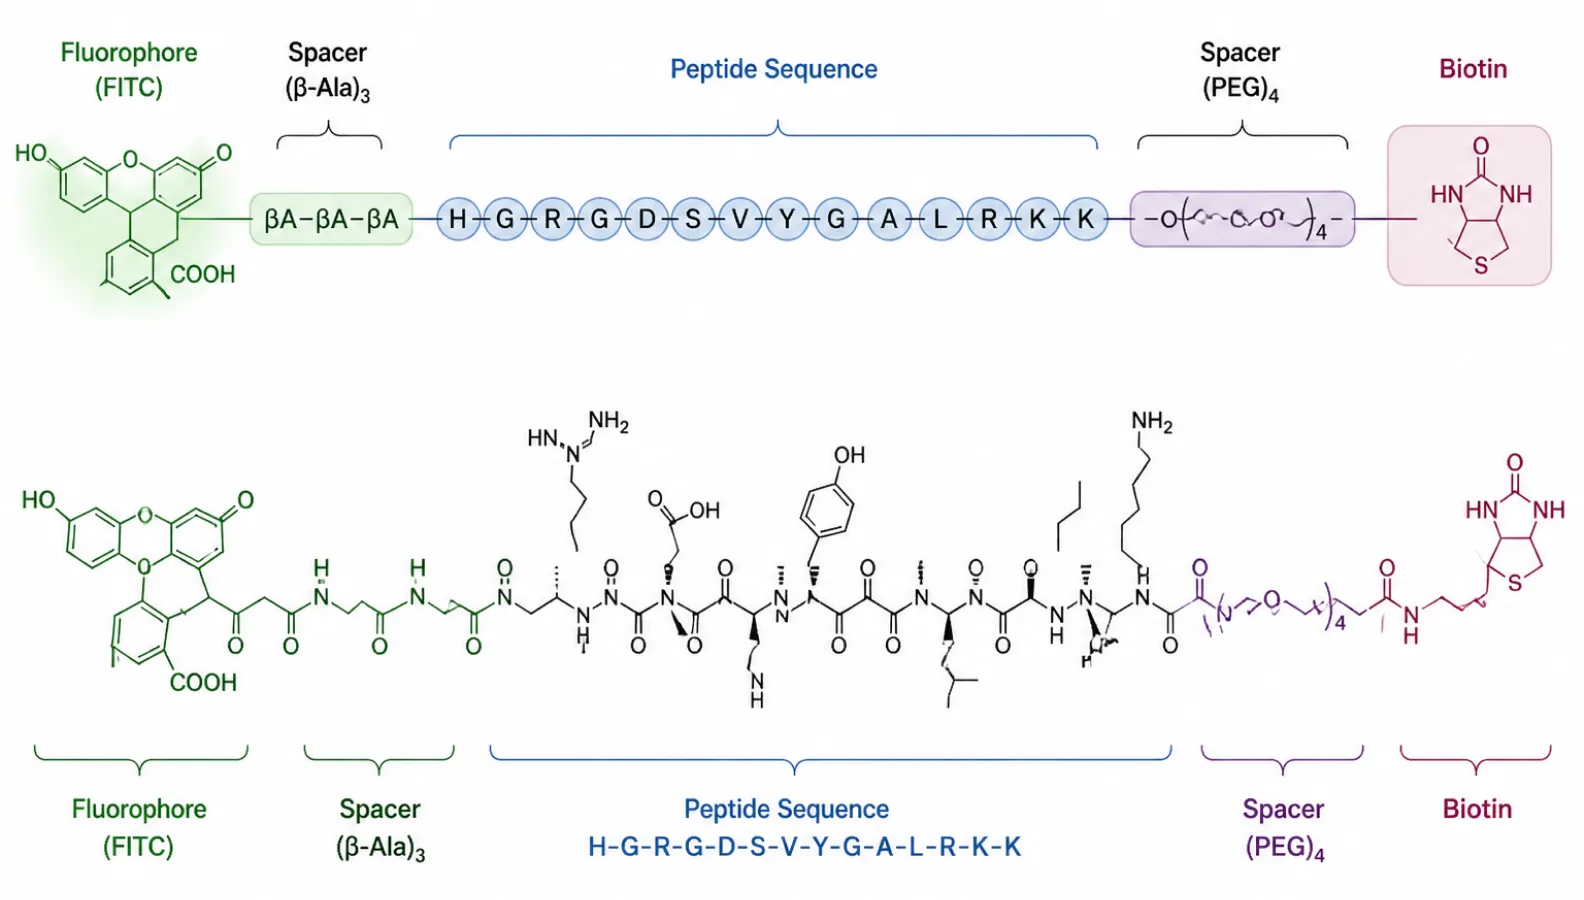
对于在流式细胞术、荧光显微镜和结合动力学中的应用,荧光基团会共价偶联到多肽上。FITC(异硫氰酸荧光素)和 FAM 是绿色发射的标准选择,而 TAMRA 和花青染料(Cy3, Cy5)提供红色至近红外选项。为了防止庞大的疏水性荧光基团干扰多肽的天然结合行为,标准做法是在多肽序列和染料之间插入一个脂肪族间隔臂(spacer),例如 Ahx(氨基己酸)或短 PEG 链。
生物素化
生物素与链霉亲和素(或亲和素)之间的非共价相互作用是自然界中已知最强的相互作用之一,其解离常数 (Kd) 在 10^-14 mol/L 的数量级。生物素化多肽对于 pull-down (下拉) 实验、表面等离子体共振 (SPR) 固定和酶联免疫吸附测定 (ELISA) 至关重要。与荧光标签类似,生物素通常通过 Ahx 或 PEG 间隔臂连接,以确保一旦多肽与其靶标结合,庞大的链霉亲和素四聚体仍然可以接触到标签。
磷酸化
信号传导通路在很大程度上受丝氨酸、苏氨酸和酪氨酸残基的可逆磷酸化调节。特异性磷酸化多肽的合成使研究人员能够绘制激酶特异性图谱、确定磷酸酶动力学,并分离磷酸化依赖性结合蛋白(例如包含 SH2 结构域的蛋白)。引入磷酸化残基需要在合成过程中使用专门的构件 (building blocks),并进行仔细处理以防止在切割和纯化过程中发生去磷酸化。
合成与制造的复杂性
在固相多肽合成 (SPPS) 过程中引入复杂的修饰需要严格的化学策略,特别是正交保护 (orthogonal protection)。在标准的 SPPS 中,侧链受保护基团保护,这些基团对重复的 Fmoc 脱保护循环是稳定的,但在多肽从树脂上最终切割时会同时被切除。
当需要修饰(如内酰胺桥或特定的侧链荧光基团)时,必须用独特的、“正交”的基团保护目标残基,这些基团可以被选择性地去除,而序列的其余部分仍受保护并锚定在树脂上。例如,合成侧链到侧链的内酰胺桥通常利用 Allyl 和 Alloc 保护基,在最后的切割步骤之前使用钯催化剂将它们选择性地去除。这些额外的树脂上反应增加了合成的复杂性,降低了总产率,并要求通过 HPLC 和质谱进行高分辨率的分析验证,以确认绝对正确的质量和纯度。与专业的多肽修饰服务设施合作,可确保满足这些复杂的化学要求而不影响最终产品的完整性。
选择最佳修饰策略
修饰的选择必须严格符合实验的生物学目标。对于简单的体外酶学分析,末端乙酰化和酰胺化可能提供足够的稳定性。对于稳健的动物模型或复杂的药代动力学研究,环化或 PEG 化通常是强制性的。在设计用于成像或 pull-down 实验的探针时,荧光基团或生物素标签的位置——以及适当间隔臂的包含——决定了构建体的功能可行性。对于需要多个同时修饰或非标准偶联的序列,我们的定制多肽合成平台可提供高级研究应用所需的分析精度。
常见问题 (FAQ)
N端乙酰化和C端酰胺化在功能上有什么区别?
乙酰化中和N端的正电荷,而酰胺化中和C端的负电荷。在功能上,乙酰化阻断N端氨肽酶,酰胺化阻断C端羧肽酶。同时使用这两种修饰可以在生物血清中提供针对末端酶促降解的完全保护。
环化如何提高多肽的结合亲和力?
当线性多肽在结合受体并折叠成生物活性构象时,会失去大量的熵。环化在结合发生之前预先将多肽组织成这种刚性构象。因为在结合事件中花费在限制分子形状上的热力学能量较少,总体结合亲和力通常会增加。
在连接荧光标签或生物素时,为什么间隔臂是必要的?
荧光基团和生物素都是庞大的分子。如果直接连接到多肽序列上,它们会导致空间位阻,物理上阻碍多肽与其靶受体的相互作用。灵活的间隔臂,如 Ahx(氨基己酸)或 PEG 链,提供了功能标签与活性多肽结构域之间的距离,从而保留了生物活性。
PEG化会对抗多肽活性产生负面影响吗?
如果是设计不当,会的。虽然 PEG化通过屏蔽多肽显著增加半衰期并防止蛋白水解降解,但庞大的聚合物链也可能阻断受体结合。位点特异性的 PEG化(放置在远离已知结合界面的位置)是平衡改善的药代动力学与保留生物学功能所必需的。
多肽环化为什么需要正交保护基团?
正交保护基团可以在特定的化学条件下被去除,而不会影响多肽其余部分上的主要保护基团。这使化学家能够选择性地仅暴露打算用于环化的两个侧链(例如,形成内酰胺桥),同时序列的其余部分保持受保护状态,从而防止合成过程中出现不必要的交叉反应。
可以在单个合成多肽上应用多个修饰吗?
是的,经常组合多个修饰。例如,单个序列可以进行 N端乙酰化、C端酰胺化、通过二硫键内部环化,并在特定赖氨酸残基上偶联荧光基团。然而,每增加一个修饰都会增加合成的复杂性,需要更复杂的正交保护策略,并通常会降低最终的总体产率。
-

Synpeptide
多肽专业CRO/CDMO企业
SynPeptide研究团队汇聚了一批专注于多肽合成、纯化与分析评估的研究人员。基于受托合成产品与常规目录多肽实验一线积累的实践经验,我们面向科研人员、制剂开发人员和产品开发者,发布有据可依的专业内容。所有发布内容均依据最新学术文献并结合公司内部质量管理数据进行了验证,重视准确性与可重复性,践行SynPeptide「恰当传播多肽科学信息」的理念。

























